Phần lớn protein bị phá hủy gần nước sôi: Vi sinh vật biển sâu này vẫn cố định nitrogen ở 92°C
Archaeon Methanocaldococcus infernus vẫn tăng trưởng nhờ N₂ ở khoảng 91,7°C. Nitrogenase của nó có nhiệt độ nóng chảy ước tính 92,3°C và một phần protein còn tồn tại sau 98°C — nhưng hoạt tính enzyme tinh sạch mới chỉ được đo trực tiếp tới 50°C, vì hệ tái tạo ATP của phép thử không chịu được nóng hơn.

Gần nhiệt độ nước sôi, phần lớn protein mất cấu trúc ba chiều cần thiết để hoạt động. Nhưng với Methanocaldococcus infernus, một archaeon siêu ưa nhiệt sống trong môi trường biển núi lửa, đó lại gần với điều kiện sống bình thường. Nhóm nghiên cứu tại Max Planck Institute for Marine Microbiology và Institut de Biologie Structurale vừa cho thấy vi sinh vật này có thể tăng trưởng bằng cách cố định N₂ ở khoảng 91,7°C, trong khi bộ máy nitrogenase phía sau phản ứng có độ bền nhiệt gần điểm sôi của nước.
Nghiên cứu được công bố trên Nature Communications ngày 8/9/2026. Nitrogenase xúc tác một trong những phản ứng khó nhất của sinh học: bẻ liên kết ba rất bền trong N₂ và biến nitrogen thành ammonia, dạng mà tế bào có thể đưa vào các phân tử sinh học.
Điểm cần làm rõ ngay từ đầu là hai con số nhiệt độ trong paper không hoàn toàn giống nhau. M. infernus được chứng minh có thể sống theo kiểu diazotrophic — dùng N₂ làm nguồn nitrogen — tới khoảng 91,7°C. Còn nitrogenase tinh sạch có nhiệt độ nóng chảy ước tính 92,3°C. Nhóm chưa trực tiếp đo tốc độ tạo ammonia của enzyme tinh sạch ở hơn 90°C; assay enzyme dừng ở 50°C vì hệ tái tạo ATP dùng trong thí nghiệm không chịu được nhiệt độ cao hơn.
Một vi sinh vật vẫn lấy nitrogen từ N₂ ở 91,7°C
Nitrogen chiếm phần lớn khí quyển, nhưng N₂ rất khó sử dụng về mặt sinh học vì hai nguyên tử nitrogen bị giữ với nhau bằng một liên kết ba bền. Chỉ một số vi sinh vật — gọi chung là diazotroph — sở hữu nitrogenase đủ khả năng phá rào cản đó.
Trong thí nghiệm, nhóm thích nghi M. infernus với môi trường không bổ sung ammonium, buộc tế bào phải dựa vào N₂ để lấy nitrogen. Archaeon vẫn tăng trưởng hoàn toàn tự dưỡng với thời gian nhân đôi khoảng hai giờ và đạt nhiệt độ tăng trưởng diazotrophic tối đa khoảng 91,7°C. Tế bào còn chịu được tới khoảng 93°C trong thời gian ngắn, nhưng mất khả năng sống sau 24 giờ ở điều kiện này.
Điều đó quan trọng vì nó chứng minh cả một chuỗi sinh học — không chỉ một protein cô lập — vẫn có thể thực hiện nitrogen fixation gần điểm sôi của nước. Nitrogenase phải được tổng hợp đúng, lắp các cụm kim loại phức tạp, nhận electron, dùng ATP và phối hợp với metabolism của tế bào trong môi trường mà nhiều protein thông thường sẽ nhanh chóng denature.
Nhóm còn thấy M. infernus cần áp suất riêng phần N₂ khá cao để tăng trưởng tối ưu trong điều kiện thử nghiệm. Tác giả cho rằng một phần nguyên nhân có thể là độ hòa tan của N₂ giảm ở nhiệt độ cao, mặc dù các tương tác giữa H₂ và N₂ trong metabolism cũng có thể góp phần.
Nitrogenase của nó bắt đầu mất cấu trúc ở khoảng 92,3°C
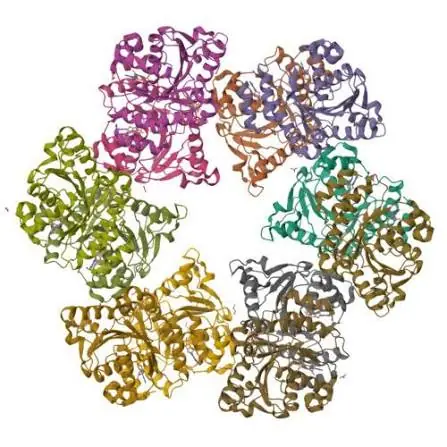
Nhóm tinh sạch trực tiếp hai thành phần chính của nitrogenase từ tế bào. Phần xúc tác lớn, MiNifDK, mang cụm FeMo-cofactor nơi phản ứng N₂ xảy ra; protein MiNifH nhỏ hơn chịu trách nhiệm chuyển electron tới phức hợp xúc tác theo chu kỳ gắn và thủy phân ATP.
Trong phép thử denaturation, nhiệt độ nóng chảy ước tính của MiNifDK là 92,3°C. Để so sánh trong cùng phương pháp, NifDK từ vi khuẩn mô hình Azotobacter vinelandii có giá trị khoảng 60,1°C. MiNifDK vì thế bền hơn khoảng 32°C theo phép đo này.
Thông cáo của Max Planck Society mô tả protein bắt đầu phân rã quanh 90°C nhưng vẫn còn một phần nguyên vẹn ở 98°C. Điều đó không có nghĩa toàn bộ enzyme hoạt động bình thường ở 98°C; đây là phép đo độ bền cấu trúc, không phải phép đo tốc độ xúc tác tại nhiệt độ đó.
Sự phân biệt này đặc biệt quan trọng với một enzyme cực nhiệt. Một protein có thể còn giữ cấu trúc ở nhiệt độ rất cao nhưng activity phụ thuộc thêm vào các partner, ATP, electron donor và những thành phần khác của reaction mixture.
Enzyme tinh sạch mới chỉ được đo trực tiếp tới 50°C
Ở nhiệt độ phòng, hệ nitrogenase của M. infernus gần như không tạo NH₃ có thể phát hiện được. Khi tăng lên 50°C — giới hạn của hệ tái tạo ATP trong assay — nhóm đo được specific activity khoảng 280 ± 18,2 nmol NH₃ mỗi phút trên mỗi mg MiNifDK.
Tác giả sau đó dùng quan hệ Arrhenius để ngoại suy lên 80°C và nhận được khoảng 2.240 nmol NH₃/phút/mg MiNifDK. Con số này cao hơn mức khoảng 500–900 nmol/phút/mg được báo cáo cho nitrogenase tự nhiên của A. vinelandii. Nhưng đây là giá trị ngoại suy, không phải activity đã được đo trực tiếp ở 80°C.
Vì vậy, cách diễn giải chính xác là: sinh vật hoàn chỉnh đã được quan sát cố định N₂ ở gần 92°C; nitrogenase tinh sạch có độ bền nhiệt phù hợp với môi trường đó; còn tốc độ enzyme ở những nhiệt độ cao nhất vẫn chưa được đo trực tiếp bằng assay hiện tại.
Nghịch lý thú vị là chính độ cứng giúp protein không bị phá hủy ở nhiệt độ cao lại khiến nó kém hoạt động khi lạnh. Nhóm cho rằng stabilization enthalpic giữ cấu trúc quá cứng ở nhiệt độ thấp, hạn chế những chuyển động cục bộ mà enzyme cần trong quá trình xúc tác. Với nitrogenase này, nhiệt không chỉ là thứ enzyme chịu đựng — nó còn có thể là điều kiện cần để protein đạt đủ flexibility cho phản ứng.
Độ bền không đến từ việc “gia cố” toàn bộ protein
Cấu trúc tinh thể được giải ở độ phân giải 1,37 Å và 1,21 Å cho thấy MiNifDK là scaffold nitrogenase đơn giản nhất được mô tả tới nay. Nhưng nhóm không thấy một công thức đơn giản kiểu “nhiều salt bridge hơn ở mọi nơi” có thể giải thích độ bền nhiệt.
Thay vào đó, họ đề xuất một số hot spot ổn định cục bộ. Hydrogen bond, salt bridge và cụm residue kỵ nước được bố trí lại tại những vị trí chiến lược, củng cố các tiếp xúc nhất định trong protein. Việc phân bố glycine và proline cũng dường như được điều chỉnh để giữ độ cứng ở nơi cần thiết nhưng vẫn cho phép flexibility ở những vùng phải chuyển động.
Điểm đáng chú ý là nhiều hot spot nằm trên bề mặt và cách xa FeMo-cofactor cũng như P-cluster. Điều đó gợi ý vùng catalytic core vốn đã cần một cân bằng rất chặt giữa ổn định và chuyển động; tiến hóa không đơn giản “đóng cứng” active site để chịu nhiệt.
Một nitrogenase mang dấu vết của cả ba họ enzyme
Nitrogenase được chia thành ba nhóm chính dựa trên metallocofactor: molybdenum nitrogenase, vanadium nitrogenase và iron-only nitrogenase. MiNifDK chứa molybdenum, điều mà nhóm xác nhận bằng X-ray anomalous scattering tại synchrotron. Nhưng kiến trúc của nó lại chia sẻ đặc điểm với cả ba nhóm.
Điều này phù hợp với giả thuyết trước đó rằng các nitrogenase cổ xưa có thể gần với enzyme của Methanococcales hơn những phiên bản vi khuẩn hiện đại. Paper không chứng minh trực tiếp một cây tiến hóa mới, nhưng cấu trúc đơn giản và sự pha trộn đặc điểm của ba isoform củng cố kịch bản đó.
M. infernus cũng sở hữu một nif operon tối giản: bốn gene cấu trúc, hai gene điều hòa và một số protein phụ trợ tiềm năng. Đối với các nhóm muốn chuyển khả năng nitrogen fixation sang hệ sinh học khác, một bộ gene gọn hơn về nguyên tắc hấp dẫn hơn một machinery quá phức tạp — nhưng việc tái tạo nitrogenase hoạt động trong một host mới vẫn là bài toán khó vì các metallocofactor phải được lắp chính xác và enzyme cực kỳ nhạy với oxygen.
Tinh thể vô tình “đóng băng” một trạng thái hiếm của phản ứng
Độ bền bất thường còn tạo ra một lợi ích khác: nhóm có thể bắt được những trạng thái redox khó quan sát trong nitrogenase thông thường.
P-cluster, cụm kim loại chịu trách nhiệm chuyển electron về phía active site, xuất hiện trong một cấu hình P¹⁺ hiếm — trạng thái thiếu electron được cho là xuất hiện tạm thời trong chu kỳ xúc tác. Ở FeMo-cofactor, một dạng tinh thể khác cho thấy mixture khoảng 50/50 giữa trạng thái nghỉ và cái được gọi là “turnover state”.
Trạng thái turnover này trước đây đã được thấy trong vanadium và iron-only nitrogenase nhưng chưa từng được quan sát theo cách tương tự ở molybdenum nitrogenase. Trong cấu hình đó, một nguyên tử sulfur dịch khỏi vị trí bình thường và một ligand chưa xác định xuất hiện giữa hai nguyên tử iron.
Tuy nhiên, tác giả nhấn mạnh rằng việc gọi đây là “turnover state” vẫn dựa trên nomenclature hiện có và cơ chế cụ thể còn tranh luận. Ngay cả ở độ phân giải gần cấp nguyên tử, họ chưa xác định được ligand đang bridge hai nguyên tử iron là gì. Spectroscopy và các thí nghiệm khác sẽ cần thiết để biết cấu hình này có thực sự là một intermediate của phản ứng bẻ N₂ hay không.
Chưa phải một con đường thay thế Haber–Bosch
Nitrogenase luôn hấp dẫn với công nghệ ammonia vì sinh học có thể giảm N₂ ở áp suất và nhiệt độ thấp hơn nhiều so với Haber–Bosch. Paper nhắc lại rằng Haber–Bosch thường vận hành ở hàng trăm bar và vài trăm độ C, đồng thời là một nguồn phát thải CO₂ đáng kể khi hydrogen đầu vào còn đến từ nhiên liệu hóa thạch.
Nhưng một nitrogenase chịu nhiệt không tự động trở thành catalyst công nghiệp. Enzyme vẫn cần ATP, electron donor, môi trường gần như không có oxygen và cả một hệ protein để lắp metallocofactor. Trong thí nghiệm, hoạt tính ở nhiệt độ cao nhất còn chưa thể đo trực tiếp vì chính hệ phụ trợ của assay không chịu được nhiệt.
Ứng dụng gần hơn có thể nằm ở việc dùng MiNifDK như một công cụ nghiên cứu. Protein bền và cứng cho phép các nhà cấu trúc học giữ những intermediate vốn quá ngắn ngủi hoặc quá dễ hỏng ở nitrogenase mesophilic, sau đó dùng crystallography và spectroscopy để nhìn rõ từng bước trong quá trình chuyển electron và bẻ liên kết N₂.
Nếu hiểu được cơ chế đó đủ sâu, kiến thức có thể giúp thiết kế catalyst nhân tạo hoặc các hệ sinh học tối giản hơn trong tương lai. Nhưng kết quả hiện tại trước hết giải quyết một câu hỏi nền tảng: làm thế nào một trong những enzyme phức tạp nhất của sự sống vẫn giữ được cả cấu trúc lẫn chức năng trong một sinh vật đang sống gần nhiệt độ mà chúng ta thường dùng để nấu chín protein.