Tế bào không cần đợi virus nhân bản: Sự kiện hợp màng có thể bật báo động ngay ở “cửa vào”
Một loạt thí nghiệm cho thấy tế bào có thể phản ứng với virus bọc màng ngay từ bước xâm nhập: sự biến dạng và hợp nhất màng gây tín hiệu Ca²⁺, kích hoạt IRF3 và kết nối với các đường STING hoặc RIG-I trước khi virus kịp nhân bản. Nhưng “cảm biến cửa ra vào” này không phải một protein đơn lẻ và cơ chế vẫn chưa được giải thích trọn vẹn.
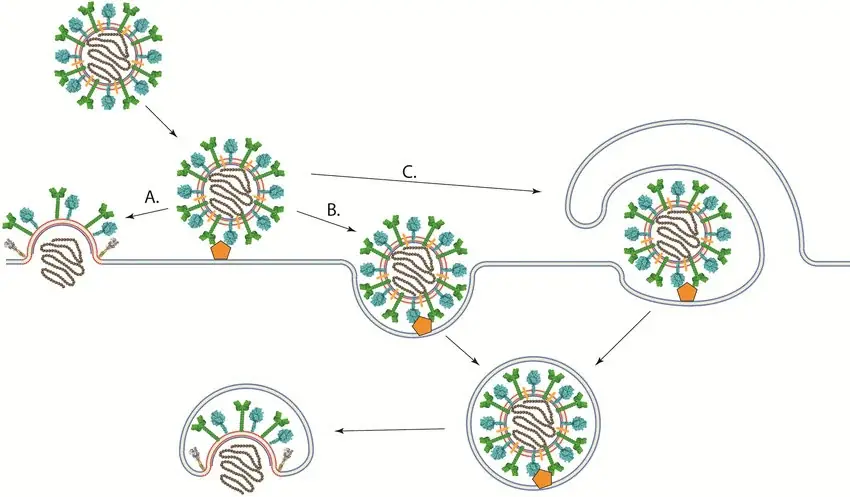
Nhiều mô tả về miễn dịch chống virus bắt đầu ở một thời điểm khá muộn: virus đã vào trong tế bào, giải phóng vật liệu di truyền và bắt đầu tạo ra những RNA hoặc DNA bất thường để các cảm biến miễn dịch nhận ra. Nhưng với virus có màng bọc, tế bào có thể nhận được tín hiệu nguy hiểm sớm hơn — ngay trong quá trình màng virus hợp nhất với màng tế bào để đưa bộ gene vào bên trong.
Đây không phải một phát hiện đơn lẻ vừa xuất hiện gần đây. Qua hơn một thập kỷ, nhiều nhóm đã xây dựng một bức tranh ngày càng rõ hơn: sự xáo trộn màng khi virus xâm nhập có thể làm thay đổi tín hiệu Ca²⁺, kích hoạt yếu tố phiên mã IRF3 và kết nối với các đường miễn dịch như STING hoặc RIG-I. Nói cách khác, tế bào không nhất thiết phải đợi virus nhân bản mới bắt đầu biết có điều bất thường.
Tuy nhiên, cách gọi “cảm biến cửa ra vào” chỉ nên hiểu như một phép so sánh. Các dữ liệu hiện có không cho thấy một protein duy nhất nằm ở màng tế bào và làm nhiệm vụ giống chuông cửa. Thay vào đó, có vẻ tồn tại một mạng cảm nhận gồm biến dạng màng, tín hiệu calcium và các hệ nhận diện nội bào.
Virus bọc màng phải để lại dấu vết ngay lúc bước vào
Virus bọc màng như herpesvirus, virus Sendai hay cytomegalovirus mang bộ gene bên trong một lớp lipid. Để xâm nhập tế bào, lớp màng này phải hợp nhất với màng plasma hoặc với màng của một endosome sau khi virus bị tế bào nuốt vào. Chính bước hợp màng tạo ra một sự kiện vật lý bất thường: hai lớp lipid vốn tách biệt phải tái sắp xếp để tạo thành một màng liên tục.
Năm 2012, một nghiên cứu trên Nature Immunology cho thấy tế bào có thể phản ứng với chính sự kiện này. Nhóm nghiên cứu sử dụng các hạt giống virus herpes simplex type 1 nhưng không mang capsid và DNA virus, cùng với các liposome có khả năng hợp màng. Dù thiếu vật liệu di truyền virus, các hạt này vẫn kích hoạt biểu hiện interferon type I và một số interferon-stimulated genes.
Khi khả năng hợp màng của các hạt bị phá hỏng, phản ứng giảm mạnh. Trong mô hình đó, tín hiệu phụ thuộc vào STING, TBK1 và IRF3, nhưng không cần DNA hay RNA virus. Điều này gợi ý rằng tế bào có thể coi một sự kiện hợp màng “không được lên lịch” như một tín hiệu nguy hiểm độc lập với việc đọc trực tiếp bộ gene của kẻ xâm nhập.
Ca²⁺ có thể là tín hiệu báo động đầu tiên
Một nghiên cứu tiếp theo đăng trên Journal of Virology năm 2016 đi sâu hơn vào tín hiệu xảy ra ở giai đoạn đầu này. Nhóm của Karen Mossman tại McMaster University theo dõi các tế bào tiếp xúc với virus Sendai, human cytomegalovirus và HSV đã được bất hoạt bằng UV để hạn chế khả năng nhân bản.
Các hạt virus bọc màng tạo ra những dao động Ca²⁺ trong bào tương. Một adenovirus không có màng bọc được dùng làm đối chứng không tạo cùng kiểu tín hiệu trong điều kiện thí nghiệm. Khi nhóm can thiệp vào tín hiệu calcium, phản ứng kháng virus do quá trình xâm nhập cũng suy giảm.
Điểm đáng chú ý là ngưỡng phản ứng khá thấp. Dựa trên phép đếm hạt của họ, chưa tới 13 hạt Sendai virus hoặc 84 hạt HCMV trên mỗi tế bào đã đủ để tạo mức bảo vệ kháng virus đầy đủ trong hệ fibroblast được thử nghiệm. Các con số này không phải ngưỡng chung cho mọi tế bào hay virus, nhưng chúng cho thấy hệ cảnh báo có thể hoạt động ở lượng kích thích tương đối nhỏ.
Nghiên cứu cũng tìm thấy một lớp tín hiệu thứ hai. Sau khi màng bị xáo trộn, các cảm biến nucleic acid trong bào tương có thể nhận diện bộ gene vừa được đưa vào tế bào — trước khi virus nhân bản. Với HCMV, calcium signaling dường như giúp kích hoạt STING và IRF3; với Sendai virus, các cảm biến RNA tham gia vào đáp ứng. Cách đọc hợp lý vì thế không phải “tế bào chỉ cảm nhận màng thay vì genome”, mà là hai tín hiệu có thể phối hợp ngay từ lúc virus bước qua cửa.
“Cảm biến” không phải một protein duy nhất
Một nghiên cứu năm 2023 trên Viruses làm bức tranh phức tạp hơn. Nhóm nghiên cứu dùng protein hợp màng p14 của reovirus như một công cụ để tạo ra sự kiện hợp màng mà không cần một virus hoàn chỉnh.
Trong mô hình “fusion from without”, khi p14 được đưa từ bên ngoài vào để làm màng tế bào hợp nhất, calcium signaling là cần thiết nhưng không đủ. Phản ứng còn phụ thuộc mạnh vào các RIG-I-like receptors — nhóm cảm biến thường gắn với RNA. Các tác giả cho rằng vật liệu di truyền được phát hiện trong trường hợp này có thể đến từ chính tế bào chứ không phải từ virus.
Khi p14 được biểu hiện từ bên trong tế bào và gây “fusion from within”, phản ứng lại cần cả RIG-I-like receptors lẫn STING. Cả hai kiểu hợp màng đều hội tụ về IRF3 và interferon, nhưng đường đi tới đó khác nhau.
Điều này cũng giúp giải thích vì sao kết quả giữa các nghiên cứu không hoàn toàn giống nhau. Công trình năm 2012 thấy tín hiệu fusion phụ thuộc STING nhưng không phụ thuộc các đường RIG-I trong hệ họ sử dụng; nghiên cứu năm 2023 lại thấy RIG-I-like receptors đóng vai trò quan trọng trong mô hình p14. Khác biệt có thể đến từ loại tế bào, loại sự kiện hợp màng và cách màng bị xáo trộn. Cho tới nay, chưa có bằng chứng cho một “receptor hợp màng” phổ quát có thể giải thích mọi trường hợp.
Tại sao phát hiện virus trước khi nhân bản lại có lợi?
Đợi virus nhân bản có một bất lợi rõ ràng: khi đó kẻ xâm nhập đã có thời gian thiết lập các phức hợp sao chép và, với nhiều virus, bắt đầu sản xuất protein để làm suy yếu interferon hoặc né các cảm biến miễn dịch. Nhận biết ngay ở bước vào tạo cho tế bào một khoảng thời gian sớm hơn để bật các gene kháng virus.
Phản ứng này cũng có thể giải thích vì sao những hạt virus không còn khả năng nhân bản, virus-like particle hoặc các hệ phân phối dựa trên lipid vẫn có thể kích hoạt miễn dịch. Bản thân việc đưa một cấu trúc lipid lạ qua màng tế bào đã có thể tạo tín hiệu stress, trước cả khi nội dung được vận chuyển bên trong phát huy tác dụng.
Tuy vậy, không nên suy rộng rằng mọi virus bọc màng đều lập tức bị phát hiện theo cùng một cách. Virus có đường xâm nhập khác nhau, dùng các receptor khác nhau và hợp màng ở các ngăn tế bào khác nhau. Nhiều virus còn mã hóa protein chuyên chặn IRF3, STING hoặc các đường interferon sau khi vào tế bào. Một hệ cảnh báo sớm không đồng nghĩa với một hệ phòng thủ luôn thắng.
Điều còn thiếu là mắt xích đầu tiên
Câu hỏi quan trọng nhất vẫn chưa được giải quyết đầy đủ: tế bào thực sự đo điều gì khi hai màng hợp nhất?
Có thể đó là thay đổi về độ cong và thành phần lipid, sự mở ngắn của các kênh ion, giải phóng Ca²⁺ từ kho nội bào hoặc một dạng stress cơ học khác. Những tín hiệu này sau đó có thể làm các hệ cảm biến nucleic acid trở nên nhạy hơn hoặc đưa STING và IRF3 vào trạng thái dễ kích hoạt. Nhưng chưa có một phân tử duy nhất được xác nhận là “chuông cửa” phổ quát.
Chính khoảng trống này làm hướng nghiên cứu trở nên đáng chú ý. Nếu xác định được mắt xích đầu tiên nối sự kiện hợp màng với các đường interferon, giới nghiên cứu sẽ hiểu rõ hơn cách tế bào phân biệt một quá trình hợp màng sinh lý bình thường với một lần xâm nhập bất thường. Nó cũng có thể giúp giải thích vì sao cùng một nền tảng lipid hoặc virus vector lại tạo phản ứng miễn dịch rất khác nhau giữa các loại tế bào.
Vì vậy, hình ảnh chính xác nhất hiện nay không phải là một “cảm biến cửa ra vào” đứng gác ngoài màng. Đó giống một hệ báo động nhiều tầng hơn: màng bị xáo trộn, calcium đổi nhịp, các cảm biến nội bào được đánh thức và IRF3 bắt đầu bật chương trình kháng virus — tất cả có thể diễn ra trước khi virus kịp tạo ra thế hệ bản sao đầu tiên.